Quels caractères du medaka sont récessifs, lesquels dominants, lesquels liés au sexe, et en existe-t-il de mortels ? La question mérite une vraie réponse, car le medaka est l’un des vertébrés dont la génétique est la mieux connue au monde : le premier article sur ses couleurs date de 1921, et une étude de janvier 2026 a séquencé 86 variétés d’ornement japonaises pour relier les noms du hobby aux gènes. Voici ce que l’on sait, caractère par caractère, ce que l’on observe quand on croise, et ce qui reste inconnu malgré un siècle de travail.
Deux gènes font les quatre couleurs de base
En 1921, le généticien japonais Tatuo Aida a publié l’analyse de 22 croisements et de 17 281 poissons. Il a montré que les quatre couleurs de fond du medaka s’expliquent par deux gènes, chacun avec une forme active et une forme inactive, et que les deux formes inactives sont récessives : elles ne s’expriment que si le poisson en porte deux copies.
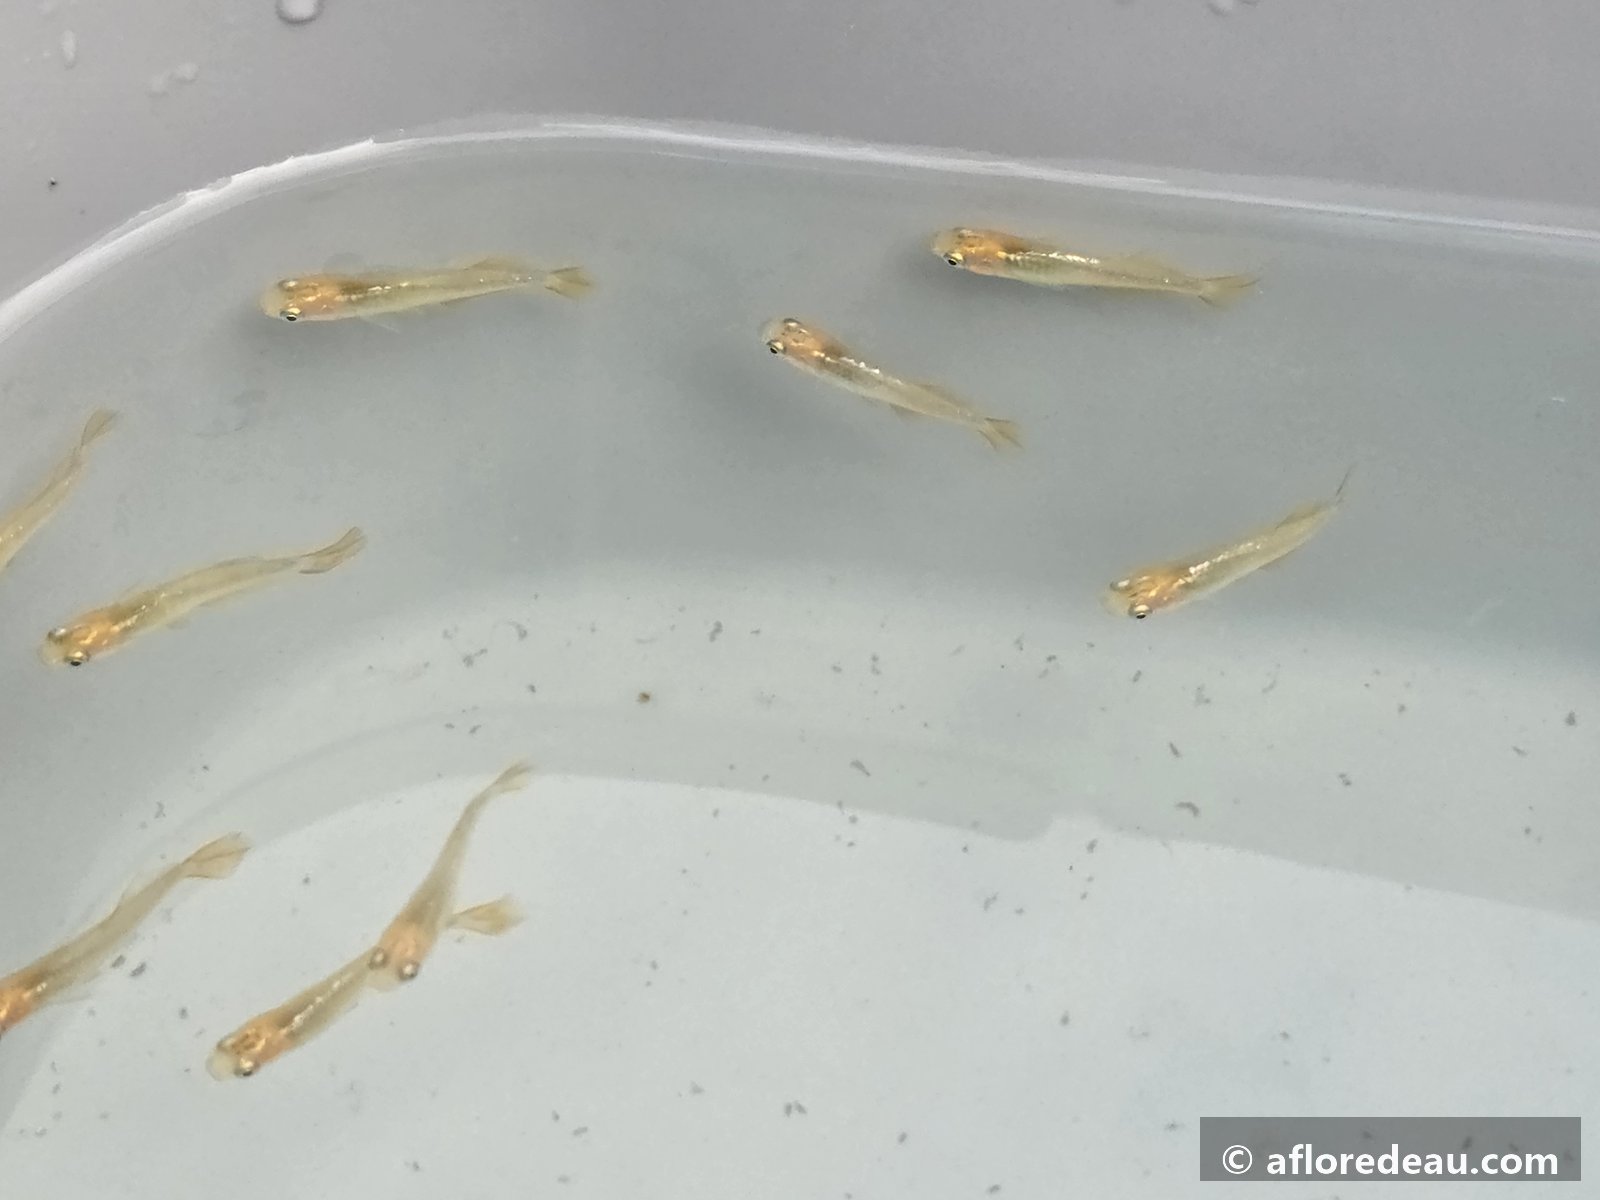
- Le gène b commande la mélanine, le pigment noir. Un poisson qui en porte deux copies inactives n’a presque plus de noir : c’est le Himedaka, le medaka orange élevé au Japon depuis des siècles. Le gène a été identifié en 2001 (il s’appelle slc45a2) ; chez l’humain, le même gène est responsable d’une forme d’albinisme.
- Le gène r commande le pigment orange des xanthophores. Deux copies inactives, et le poisson est gris-bleu : c’est le medaka bleu, l’Ao. Ce gène est resté sans nom pendant plus de cent ans ; une prépublication de juin 2025 l’identifie enfin (ttc39bl), ce qui reste à confirmer par une publication évaluée.
| Génotype | Couleur | Nom du hobby |
|---|---|---|
| B actif, R actif | brun | type sauvage, Kuro medaka |
| b inactif, R actif | orange | Himedaka, base du Youkihi |
| B actif, r inactif | gris-bleu | Ao, medaka bleu |
| b inactif, r inactif | blanc | Shiro, medaka blanc |
Ces deux gènes se transmettent indépendamment l’un de l’autre. Croisez un orange avec un bleu : les jeunes de première génération sont tous bruns, parce que chacun reçoit une copie active de b par le parent bleu et une copie active de r par le parent orange. Les deux couleurs n’ont pas disparu, elles sont cachées. Croisez ces bruns entre eux et la deuxième génération redonne, en moyenne, 9 bruns, 3 orange, 3 bleus et 1 blanc sur 16. Ces proportions ont été vérifiées en laboratoire sur le croisement brun × orange ; pour orange × bleu, elles découlent des mêmes règles, et les éleveurs japonais enseignent le même résultat.
Le Youkihi n’est pas un troisième gène. Il porte le même b inactif que le Himedaka, et sa couleur plus rouge vient d’une sélection sur de nombreux gènes de moindre effet : l’étude de 2026 n’a trouvé aucun locus propre au Youkihi, seulement davantage de xanthophores et dix fois plus d’astaxanthine que chez un Himedaka. C’est pourquoi sa fixation est quasi totale, mais que l’intensité du rouge se perd si on cesse de trier.
Ce qui est lié au sexe
Le medaka a des chromosomes sexuels comme nous, XX pour les femelles et XY pour les mâles. Le gène qui décide du sexe, DMY, a été identifié en 2002 ; c’était le premier gène de ce type trouvé chez un vertébré autre que les mammifères. Il siège sur le chromosome 1.
Or le gène r de la couleur orange est sur ce même chromosome 1. Aida l’avait remarqué dès 1921 : la couleur bleue ou blanche se transmettait différemment selon le sexe. Les laboratoires en ont tiré une souche célèbre, d-rR, où les femelles sont blanches et les mâles orange, parce que la copie active de r n’existe que sur le Y. Dans cette souche, la couleur annonce le sexe avec plus de 99 % de fiabilité dès les premières semaines.
N’essayez pas de reproduire cela avec vos poissons. Les medakas blancs et bleus du commerce portent la forme inactive de r sur le X et sur le Y, de sorte que le caractère se transmet comme n’importe quel récessif, sans différence entre mâles et femelles. Pour sexer vos jeunes, il reste la forme des nageoires, avec ses pièges chez les Hikari.
Le sexe lui-même n’est pas entièrement figé par les chromosomes. Des œufs incubés à 32 °C jusqu’à l’éclosion ont donné, selon la souche, 24 à 50 % de femelles génétiques devenues des mâles fertiles ; l’inverse ne se produit pas, les XY restent mâles. Le mécanisme passe par le cortisol, l’hormone du stress. Pour l’éleveur, cela veut dire qu’une ponte de canicule incubée dans un bac en plein soleil peut donner un lot déséquilibré vers les mâles. Un incubateur à l’ombre, sous 30 °C, évite la question. Le seuil, la fenêtre et les gestes sont détaillés dans température et sexe des alevins.
Les formes du corps : Hikari et Daruma
Le type Hikari, dorsale copie conforme de l’anale, caudale en losange et dos argenté, est le mutant que les laboratoires appellent Da, pour double anal fin. Sa cause est connue : un gros morceau d’ADN mobile inséré près de deux gènes du développement, zic1 et zic4. L’étude de 2026 l’a retrouvé chez les 35 poissons de type Hikari examinés, sans exception.
On lit partout que le Hikari est récessif. C’est presque vrai, et la nuance compte pour l’éleveur. Il faut deux copies pour obtenir le corps Hikari complet, mais une seule copie se voit déjà : le porteur a une dorsale élargie, avec une dizaine de rayons au lieu de six. Les généticiens parlent de dominance incomplète. Un jeune issu d’un Hikari et d’un normal est donc reconnaissable à sa dorsale, et c’est lui qu’on garde si l’on veut retrouver le Hikari à la génération suivante. Le Hikari homozygote est parfaitement viable et fertile.
Le Daruma, au corps raccourci par des vertèbres soudées, est connu des laboratoires depuis 1966 sous le nom de fu, pour fused. Il est récessif et indépendant du sexe. Le gène exact n’est pas identifié : l’étude de 2026 cerne une région du chromosome 4 sans y désigner de coupable, et il existe sans doute plusieurs mutations différentes qui donnent le même aspect. Deux choses sont établies et utiles. D’abord, l’expression dépend de la température d’élevage des alevins : une source japonaise, citant des travaux de 1959, donne 10 à 20 % de corps courts à 20 °C et près de 100 % à 28 °C chez des poissons pourtant de même génotype. Les demi-Daruma sont l’expression intermédiaire du même fond génétique. Ensuite, certaines lignées fu ont des femelles souvent stériles, et les Daruma pondent et nagent mal : c’est un défaut de forme assumé, pas un caractère mortel.
Nageoires longues, écailles transparentes, Panda, albinos
- Nageoires longues. Le hobby japonais décrit le Matsui hirenaga comme récessif, et aucune publication ne le contredit ; la science n’a pas encore tranché le mode d’hérédité, mais l’étude de 2026 désigne un gène candidat, un canal potassique nommé kcnq5a, dont le Swallow serait une autre version. Il faut donc croiser long avec long pour fixer le caractère, comme pour un récessif. Voir le Longfin doré.
- Écailles transparentes (toumeirin). Ni le gène ni le mode d’hérédité ne sont connus : l’étude de 2026 n’a trouvé aucune région associée. Certains vendeurs parlent de dominance incomplète, sans données publiées.
- Panda, iris et péritoine transparents par manque d’iridophores. Récessif. Le gène est discuté : l’un des candidats est celui du mutant « guanineless » des laboratoires, mais le signal génomique pointe ailleurs.
- Albinos, à l’œil rose. Récessif. Il existe au moins deux gènes d’albinisme chez le medaka ; celui des variétés d’ornement serait oca2, le même qui éclaircit les yeux chez l’humain. L’idée que les albinos voient mal n’est appuyée par aucune étude chez le medaka ; une prépublication de 2026 trouve même la meilleure sensibilité visuelle chez une lignée albinos.
Miyuki, lamé, Orochi, Aurora : la sélection plutôt que le gène unique
Les caractères qui font la valeur des variétés récentes ne suivent pas les lois simples ci-dessus, et c’est précisément pourquoi on parle de taux de fixation plutôt que de récessif ou dominant.
- La lumière dorsale du Miyuki dépend de plusieurs gènes : aucun locus unique, et l’historique le confirme, puisque la bande s’est allongée de la nuque jusqu’au museau en huit ans de sélection à partir d’un seul poisson présenté au concours de 2007. Deux Miyuki à lumière complète donnent des jeunes de toutes longueurs de lumière, et l’on garde les meilleurs.
- Le lamé, ces écailles argentées dispersées, n’a pas non plus de gène identifié. Le nombre d’écailles brillantes se cumule par sélection, génération après génération.
- Le noir de l’Orochi est associé à une délétion dans un gène (adcy5) mais ne s’exprime pleinement que chez 89 % des porteurs : le reste du génome module le résultat.
- L’Aurora, aux branchies rouges visibles, est un récessif à un gène (kitlga), avec 4 % de porteurs doubles qui ne le montrent pas.
La règle pratique en découle : pour un caractère à un gène récessif, le croisement de deux porteurs donne un quart de jeunes conformes, et deux poissons conformes donnent 100 % de conformes. Pour un caractère polygénique, deux parents conformes donnent une majorité de jeunes conformes mais de qualité variable, et c’est le tri qui fait la lignée.
Les caractères mortels : ce qu’on sait vraiment
Dans la liste officielle des mutants de medaka tenue par les laboratoires japonais, un seul caractère est noté létal à l’état homozygote : Va, un mutant de laboratoire qui perd ses cellules pigmentaires, dominant à l’état hétérozygote et mortel pour l’embryon quand il est en double. Il n’existe dans aucune variété d’ornement.
L’étude de 2026, qui a passé en revue 86 variétés du hobby et 34 caractères, ne signale aucun caractère létal ni réduisant la viabilité. Ce qu’elle signale, c’est une pénétrance souvent inférieure à 100 %, et le fait que la plupart des souches d’ornement sont entretenues en consanguinité. Les lignées de laboratoire, consanguines depuis des décennies, montrent que la consanguinité n’est pas mortelle en soi chez le medaka, mais la vigueur d’une lignée se perd sans apport extérieur, et c’est l’éleveur qui le constate à la fécondité et à la taille des pontes.
Deux idées reçues circulent, qu’aucune source ne soutient. « Hikari × Hikari donne des morts » : faux, l’homozygote Da mûrit et se reproduit comme un sauvage. « Daruma × Daruma est létal » : rien ne l’indique ; ce qui est documenté, c’est la stérilité fréquente des femelles de certaines lignées et la difficulté de ponte liée à la forme. Si vos Daruma donnent peu, la cause est là, pas dans un gène mortel.
Récapitulatif
| Caractère | Hérédité | Ce qu’on observe en croisant avec un normal |
|---|---|---|
| Orange (Himedaka, Youkihi) | récessif, un gène (b) | F1 bruns, F2 un quart d’orange |
| Bleu (Ao) | récessif, un gène (r), sur le chromosome sexuel | F1 bruns, F2 un quart de bleus ; pas de différence mâles/femelles avec les souches du commerce |
| Blanc | double récessif (b et r) | F1 bruns, F2 un seizième de blancs |
| Hikari | dominance incomplète (Da) | F1 à dorsale élargie, F2 un quart de Hikari complets |
| Daruma | récessif (fu), expression selon la température | F1 normaux, F2 un quart de porteurs doubles, dont la part visible dépend de la chaleur |
| Nageoires longues | récessif selon les éleveurs japonais, gène candidat | F1 normaux, F2 un quart de longues |
| Panda, albinos, Aurora | récessifs, un gène chacun | F1 normaux, F2 un quart |
| Miyuki, lamé | polygénique | pas de proportion fixe ; sélection cumulative |
| Écailles transparentes | inconnu | à noter dans votre carnet, personne ne l’a publié |
Comment s’en servir au bac
- Un caractère récessif ne disparaît pas quand il cesse de se voir : les bruns issus de votre croisement orange × bleu portent les deux couleurs, et les redonneront entre eux.
- Pour fixer un récessif, croisez conforme avec conforme. Pour le récupérer après un croisement, gardez les F1 et attendez la F2 : un quart.
- Chez les Hikari, regardez la dorsale des jeunes normaux : ceux qui ont trop de rayons portent le gène.
- Notez la température d’incubation et d’élevage. Elle change la part de Daruma visibles, et au-dessus de 32 °C, le sexe des jeunes.
- Comptez. Sur une ponte de 40 jeunes, un récessif à un gène en donne environ 10 ; si vous en avez 0 ou 30, ce n’est pas un récessif simple.
Questions fréquentes
Peut-on obtenir un Youkihi en croisant un orange et un rouge quelconques ?
Non. Le rouge du Youkihi vient d’une sélection sur de nombreux gènes à partir du fond orange. Croiser un Youkihi avec un Himedaka donne des orange plus ou moins rouges, et il faudra des générations de tri pour revenir au rouge.
Mes deux Miyuki à lumière complète donnent des jeunes à moitié éclairés. Est-ce un défaut ?
Non, c’est l’hérédité polygénique du caractère. On garde les plus lumineux comme géniteurs de l’année suivante, et la proportion monte.
Je n’ai que des mâles dans une ponte d’août. Pourquoi ?
Si les œufs ont incubé très chaud, au soleil, une partie des femelles génétiques a pu devenir des mâles. Incubez à l’ombre, sous 30 °C.
Où lire plus loin ?
En français, rien de sérieux n’existe sur ce sujet ; c’est la raison de cette page. En anglais, l’article d’hommage à Aida de 2021 est court et accessible, et l’étude de Kon et ses collègues de 2026 est la référence pour relier les variétés aux gènes.
Sources
- Fukamachi S., Naruse K., « 100 years since the medaka’s international debut: Aida’s legacy », Genes to Genomes, Genetics Society of America, 2021, genestogenomes.org : les 22 croisements d’Aida (1921), la liaison de r au sexe.
- Kon T. et al., « Genomic consequences of domestication and the diversification of body coloration and morphology in ornamental medaka strains », Molecular Biology and Evolution, 2026, doi 10.1093/molbev/msag021 ; communiqué de l’Institut national de génétique du Japon, nig.ac.jp : 86 variétés, 34 caractères, Hikari = Da, Youkihi sans locus propre, Miyuki et lamé polygéniques, Orochi, Aurora, aucun caractère létal.
- Fukamachi S., Shimada A., Shima A., « Mutations in the gene encoding B, a novel transporter protein, reduce melanin content in medaka », Nature Genetics 28, 2001, nature.com : le gène du Himedaka.
- Kimura T., Inoue I., « ttc39bl is the gene responsible for the r locus », prépublication bioRxiv, juin 2025, biorxiv.org : le gène du medaka bleu, sur le chromosome sexuel, inactif sur X et Y chez les blancs du commerce. Non encore évalué par les pairs.
- Tomita H., « The lists of the mutants and strains of the medaka », Fish Biology Journal Medaka 4, 1992, nagoya.repo.nii.ac.jp : série allélique de b, r lié au sexe, Da « dominant incomplet », fu récessif et lignées à femelles stériles, Va létal homozygote.
- Tomita H., « Studies on the mutant of the medaka, dx-1 », Fish Biology Journal Medaka 2, 1984, nagoya.repo.nii.ac.jp : classification d’Aida, rapports 9:3:3:1 mesurés.
- Matsuda M. et al., « DMY is a Y-specific DM-domain gene required for male development in the medaka fish », Nature 417, 2002 ; Nanda I. et al., PNAS 99, 2002, pmc.ncbi.nlm.nih.gov : le gène du sexe.
- Sato T. et al., « Induction of female-to-male sex reversal by high temperature treatment in medaka », Zoological Science 22, 2005 ; Hayashi Y. et al., Molecular Reproduction and Development 77, 2010, pubmed : 32 °C, 24 à 50 % de XX mâles, rôle du cortisol.
- Kawamura T. et al., Zoological Science 20, 2003, et Yamamoto T., Journal of Experimental Zoology 123, 1953 : la souche d-rR, femelles blanches et mâles orange.
- Ohtsuka M. et al., Mechanisms of Development 121, 2004 ; Moriyama Y. et al., Current Biology 22, 2012 : le mutant Da et l’enhancer de zic1/zic4 ; Ohtsuka M. et al., Genome Research 9, 1999, pmc.ncbi.nlm.nih.gov : homozygote Da viable et fertile.
- Takeuchi K., Nature 211, 1966 : le mutant fu, vertèbres soudées, récessif.
- Fukamachi S. et al., PNAS 2004 (color interfere, somatolactine) ; Fukamachi S. et al., Genetics 168, 2004 (albinos i-3, oca2) ; Kimura T. et al., PNAS 111, 2014 (leucophore free) ; Kimura T. et al., G3 7, 2017 (guanineless, pnp4a).
- Mori F., BE-PAL, 2019, bepal.net (Daruma et température, d’après Matsuda 1959) et bepal.net (nageoires longues, Matsui hirenaga et Swallow).
- めだかの館, « メダカと遺伝と色素胞 » (le medaka, l’hérédité et les cellules pigmentaires), medakanoyakata.jp : vulgarisation japonaise, Miyuki polygénique, dorsale des hétérozygotes Hikari, astaxanthine du Youkihi.
- medaka.fr : lire le nom d’un medaka, les variétés pour débuter et leur taux de fixation, pourquoi les medakas fluorescents sont autre chose que de la sélection.